
최종 수정 2026.09.16 · 운영·편집 silveston · 전문 자격 없는 취미 운영자의 자료 정리
SPECIES WIKI · TESTUDINIDAE
러시안 육지거북
Testudo horsfieldii
중앙아시아의 건조 스텝에 사는 소형 육지거북. 1년의 아홉 달 이상을 굴 속에서 보내고, 실제로 먹을 수 있는 기간은 석 달이 채 되지 않는다.

30초 핵심 요약
- 러시안 육지거북(Testudo horsfieldii)은 중앙아시아의 건조 스텝과 사막에 사는 소형 육지거북이다. 배갑은 최대 약 22 cm로, 길이와 폭이 거의 같아 위에서 보면 원형에 가깝다.
- 이 종을 규정하는 것은 극단적으로 짧은 활동기다. 5년에 걸친 야외 추적 연구는 이 거북이 1년의 9개월 이상을 굴 속에서 보내고, 실제로 채식할 수 있는 기간은 3개월이 채 되지 않는다고 보고했다.
- 앞다리 발톱이 4개여서 영어권에서는 “four-clawed tortoise”로도 불린다. 복갑에 가동성 힌지가 없는 것도 자주 인용되는 형질이다.
- 야생에서는 화본과 풀보다 독성 식물을 선호해 먹는다는 관찰이 있다. 방목 가축과 먹이를 두고 직접 경쟁하지 않는 방향으로 밀려난 결과로 해석된다.
- IUCN 등급은 취약(VU)이지만, 그 평가는 1996년 이후 30년째 갱신되지 않았다. 그 사이 애완동물 거래로 연간 10만 개체 규모가 반출됐고, 최근 연구는 수출 신고의 상당 부분이 야생 포획 개체를 사육번식으로 위장한 것이라고 지적한다.
- 속명 표기가 Testudo와 Agrionemys로 갈려 있어, 문헌을 찾을 때 두 이름을 모두 검색해야 한다.
기본 종 정보표
| 국명 | 러시안 육지거북 (호스필드 육지거북, 스텝 거북) |
|---|---|
| 학명 | Testudo horsfieldii Gray, 1844 |
| 이명 | Agrionemys horsfieldii (Khozatsky & Mlynarski, 1966) · Testudo (Agrionemys) horsfieldii (TTWG) |
| 분류 | 거북목 > 육지거북과 > Testudo속 |
| 모식산지 | 아프가니스탄 카불 (홀로타입 BMNH 1947.3.4.3) |
| 분포 | 카자흐스탄 남부, 우즈베키스탄, 투르크메니스탄, 타지키스탄, 키르기스스탄, 이란 북·동부, 아프가니스탄, 파키스탄 북부, 중국 신장 |
| 서식 | 건조 스텝·사막, 해발 2,400 m까지 |
| 배갑장 | 최대 약 22 cm (문헌에 따라 13~25 cm 범위 보고) |
| 활동 | 주행성, 오전·저녁 이봉형 |
| 먹이 | 초식 (야생에서 80종 이상 식물 기록) |
| 번식 | 난생. 클러치당 2~6개, 시즌당 2~3회 이상 (출처별 편차 큼) |
| 수명 | 40년 초과 보고 (검증된 최장수 기록은 확인되지 않음) |
| 보전 | IUCN 취약(VU, 1996년 평가) · CITES 부속서 II |
분류와 명명
Testudo horsfieldii는 1844년 John Edward Gray가 기재했다. 종소명 horsfieldii는 미국 자연사학자 Thomas Horsfield(1773–1859)를 기린 것이고, 모식표본은 영국 자연사박물관의 BMNH 1947.3.4.3, 모식산지는 아프가니스탄 카불이다.
이 종에서 반드시 짚어야 할 것은 속명이 문헌마다 다르다는 점이다. 1966년 Khozatsky와 Mlynarski는 형태 차이를 근거로 이 거북만을 담는 단형속 Agrionemys를 세웠고, T. horsfieldii가 그 모식종이 되었다. 이후 이 속을 인정할 것인가를 두고 견해가 갈렸다.
현재 가장 널리 참조되는 처리는 거북 분류 실무그룹(Turtle Taxonomy Working Group)의 체크리스트로, Agrionemys를 속이 아니라 Testudo 속 안의 아속으로 낮춰 Testudo (Agrionemys) horsfieldii로 적는다. Reptile Database도 유효명을 Testudo horsfieldii로 유지한다.
반대 입장도 살아 있다. Vasilyev 등(2014)은 미토콘드리아 12S rRNA와 핵 RAPD 표지 양쪽에서 Agrionemys와 Testudo가 각각 독립된 클러스터를 이룬다고 보고하며 별개 속으로 인정할 것을 지지했다. 이들은 A. horsfieldii에서 6개 하플로타입(신규 3개 포함)을 확인했다.
실용적으로 중요한 결과는 이것이다. 논문을 찾을 때 두 이름을 모두 검색해야 한다. 러시아어권 학술지에 실린 이 종의 생태 연구 상당수는 제목에 Agrionemys horsfieldii를 쓴다. 한쪽 이름만으로 검색하면 핵심 문헌의 절반을 놓친다.
아종 처리도 출처마다 다르다. Reptile Database는 5아종(horsfieldii, bogdanovi, kazachstanica, kuznetzovi, rustamovi)을 열거하지만, Turtles of the World 계열 데이터베이스는 3아종(horsfieldii, kazakhstanica, rustamovi)만 인정한다.
이 아종들은 대부분 1988~2009년 사이 Chkhikvadze가 기재한 것으로, 분자 자료로 검증된 사례가 많지 않다. 지역 개체군 사이에 형태 변이가 있다는 것 자체는 여러 연구가 확인했지만, 그 변이를 몇 개의 아종으로 자를지는 아직 합의되지 않았다고 보는 편이 정확하다.
사육 개체군에서는 T. graeca ibera, T. hermanni boettgeri와의 교잡 사례가 보고되어 있다. 자연 분포권이 겹치지 않는 종들이므로, 이는 사람이 한자리에 모아 놓은 결과다.

진화
Testudo 속은 지중해 연안과 북아프리카, 서남아시아에 걸쳐 분포하는 소형 육지거북 무리다. 러시안 육지거북은 이 무리 중에서 가장 동쪽으로, 그리고 가장 대륙 내륙 깊숙이 들어간 종이다.
속 내부의 계통 관계는 van der Kuyl 등(2002)이 미토콘드리아 12S rRNA로 처음 폭넓게 다뤘고 이후 여러 연구가 이어졌다. 다만 러시안 육지거북이 Testudo 속의 어느 종과 자매군을 이루는지를 단정할 만한 근거는 이 문서 작성 시점에 확인하지 못했다. 근연 분류군은 지중해권 Testudo(T. graeca, T. hermanni, T. marginata, T. kleinmanni) 수준으로만 이해하는 것이 안전하다.
형태적으로는 이 종이 갈라져 나온 방향이 비교적 뚜렷하다. 배갑 전체가 낮고 둥글게 눌린 형태이고, 사지는 파는 데 특화되어 있다.
앞다리 발톱이 4개인 것도 같은 맥락으로 읽힌다. 다른 Testudo 종은 앞발톱이 5개다. 굴을 파는 생활이 사지 구조를 바꿨다고 보는 해석이 일반적이지만, 이 해석을 직접 검증한 1차 문헌은 확인하지 못했으므로 기능적 추론으로만 받아들여야 한다.
화석 기록과 분기 연대에 관한 정보는 이번 조사에서 확인하지 못했다. 이 항목에 관해 현재 알려진 바는 제한적이다.
굴을 파고 1년의 대부분을 지하에서 보내는 생활사가 언제 확립됐는지도 마찬가지다. 중앙아시아의 대륙성 기후가 강화된 시기와 연결지어 설명하고 싶은 유혹이 있지만, 이를 뒷받침하는 연대 자료는 확보하지 못했다.
자연 분포
핵심 분포권은 중앙아시아다. Reptile Database는 카자흐스탄 남부, 키르기스스탄, 타지키스탄, 투르크메니스탄, 우즈베키스탄, 이란 북·동부, 아프가니스탄, 파키스탄 북부를 든다. 여기에 Turtles of the World 데이터베이스는 중국 신장을 더한다.
출처마다 분포 국가 목록이 다르다는 점은 그대로 알아두는 편이 좋다. Fauna & Flora는 아르메니아·아제르바이잔·러시아까지 포함하지만, Reptile Database는 이 세 나라와 네팔 기록을 “미확인(unconfirmed)”으로 분류한다. 문헌에서 분포권을 볼 때는 확실한 핵심권과 미확인 주변 기록을 구분해서 읽어야 한다.
고도 범위는 넓다. Reptile Database는 해발 2,400 m까지, Fauna & Flora는 2,000 m 이상에서도 출현한다고 적는다. 저지대 사막부터 산악 스텝까지 걸쳐 있는 셈이다.
분포 면적 자체는 상당히 크다. Bondarenko와 Peregontsev(2017)는 우즈베키스탄에서만 287개 조사지점을 다니며 이 종이 국토의 약 67%, 약 30만 km²의 사막 경관에 분포한다고 보고했다.
다만 넓은 분포와 높은 밀도는 다른 문제다. 같은 연구는 헥타르당 10마리를 넘는 고밀도 지역이 전체 서식범위의 0.6%에 불과하다고 밝혔다. 넓게 퍼져 있되 대부분의 땅에서 밀도는 낮다.
도입 개체군도 생겼다. Donini(2024)는 미국 플로리다 남서부에서 이 종의 야외 기록을 정리하면서, 2021년 6월 10일 갓 부화한 개체가 발견된 사례를 보고했다. 미국 내에서 자연번식이 일어날 가능성을 시사하는 관찰이다.
이는 애완동물 거래 규모가 만들어낸 부산물이다. 원산지에서 수십만 마리 단위로 빠져나간 종이 다른 대륙에 정착 발판을 마련하는 경로는 파충류에서 반복적으로 나타난다.


서식 환경
전형적인 서식지는 건조 스텝과 사막이다. 모래질과 양토질 스텝, 암석 사막, 구릉지에 걸쳐 나타나며, 관목이 드문드문 흩어진 개방 경관이 중심이다.
이 종의 서식 환경을 이해하려면 굴부터 봐야 한다. 러시안 육지거북은 한낮의 고온과 밤의 저온을 모두 굴 속에서 피한다. 굴 깊이는 최대 약 2 m까지 보고되지만, 이 수치는 2차 출처에 기댄 것이다.
굴은 아무 때나 팔 수 있는 것이 아니다. 비가 와서 토양이 부드러워져야 팔 수 있고, 그래서 이 거북은 남의 굴을 방문하거나 여러 개체가 한 굴에서 밤을 보내기도 한다.
Bondarenko와 Peregontsev(2019)의 열생물학 연구는 이 서식지의 열 조건을 구체적인 숫자로 보여준다. 거북이 굴에서 나올 때 기록된 최저 체온은 9.4 °C, 최저 지표온은 11.8 °C였다.
오전 활동 중 체온은 22.1~38.0 °C 사이였고 평균은 30.5 ± 0.3 °C, 활동 중인 개체의 76%가 28.0~35.9 °C 구간에 있었다. 이 종이 실제로 쓰는 체온 구간은 생각보다 좁다.
그리고 결정적인 관찰이 있다. 5월 중순부터는 지표온이 지속적으로 40 °C를 넘어간다. 이 시점부터는 먹이가 남아 있더라도 지표에 나와 먹을 수가 없다. 이것이 뒤에서 볼 극단적인 활동 패턴의 물리적 원인이다.
연평균 기온이나 강수량 같은 기후 수치는 이번 조사에서 신뢰할 만한 출처를 확인하지 못했다.


외형
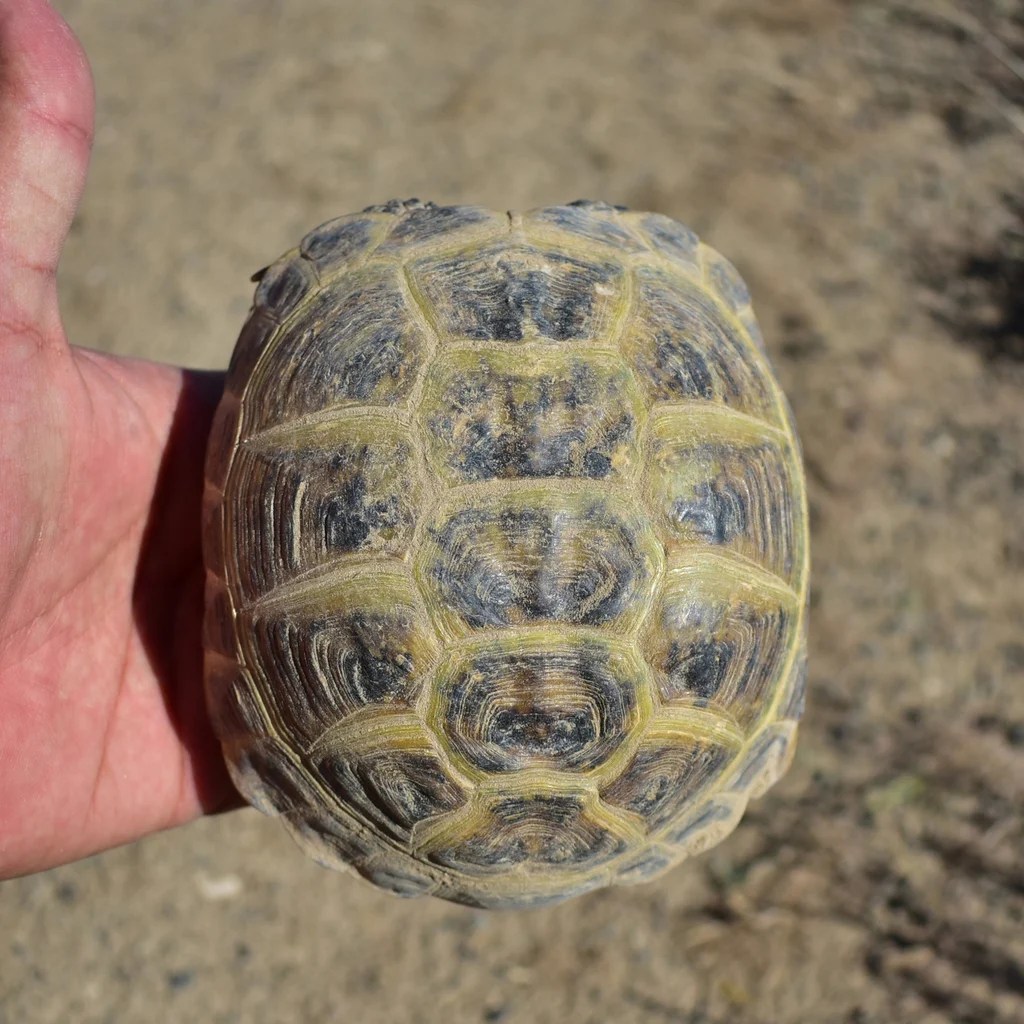
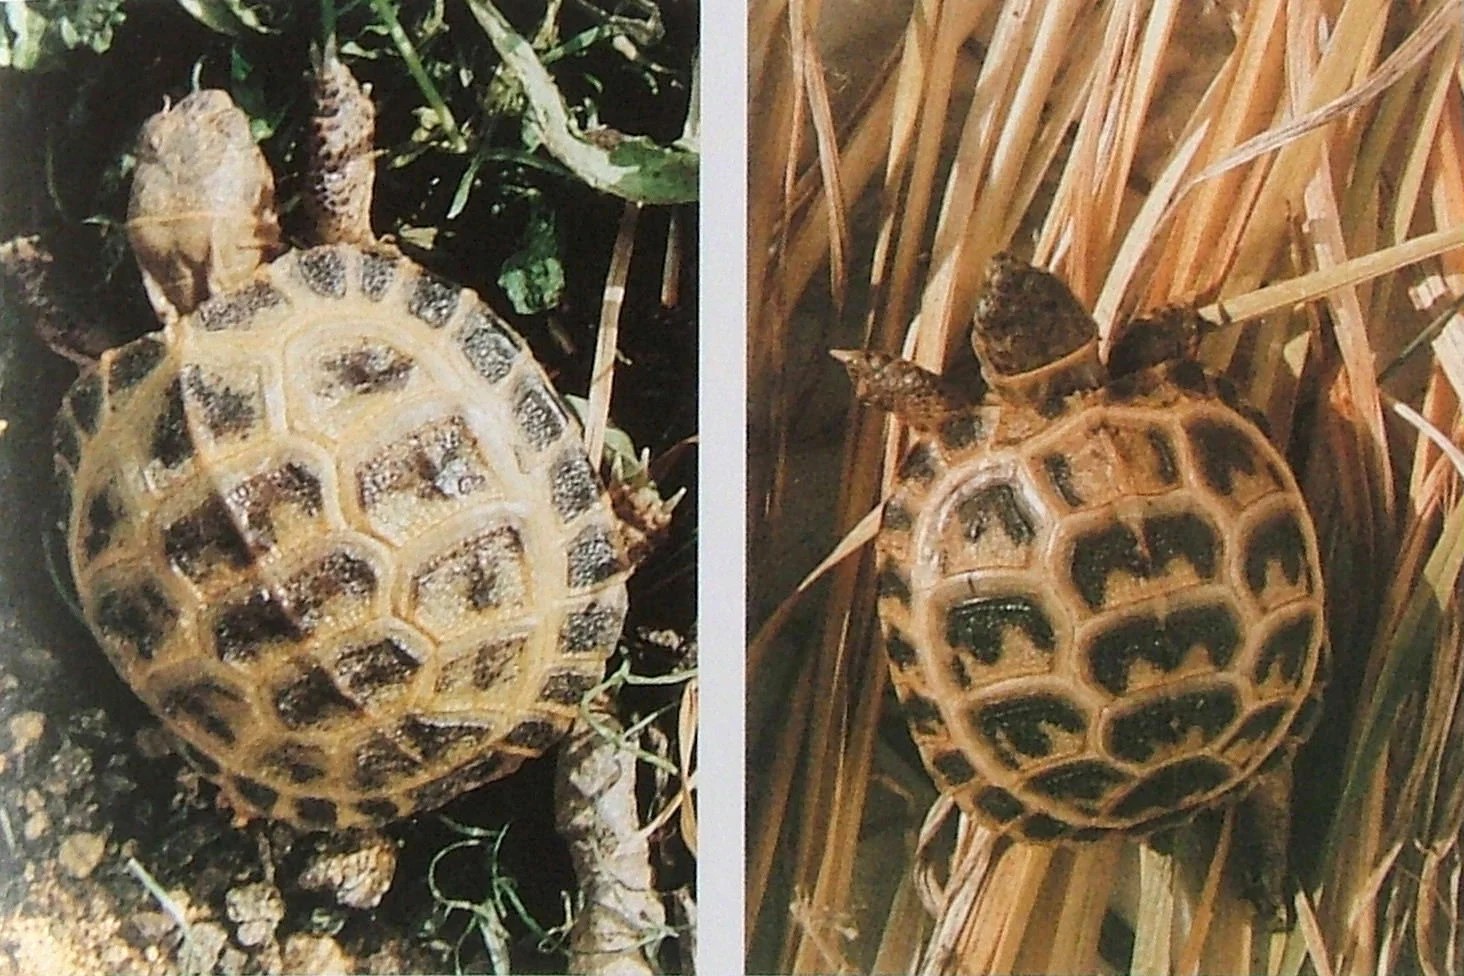
배갑은 낮고 둥글다. 길이와 폭이 거의 같아 위에서 보면 원형에 가깝고, 이는 길쭉한 T. graeca나 T. hermanni와 한눈에 구분되는 특징이다. 바탕은 담갈색에서 황갈색이고 갑판 경계와 중앙에 암갈색 색소가 얹힌다.
복갑(腹甲)에는 복부갑판과 대퇴갑판 사이의 가동성 힌지가 없다. T. graeca 암컷이나 T. marginata 같은 일부 지중해권 육지거북은 이 부위가 약간 접히는데, 이 종의 복갑은 단단하게 고정되어 있다. 다만 헤르만 육지거북(T. hermanni)도 이 힌지가 없으므로, 힌지의 유무만으로 두 종을 갈라낼 수는 없다.
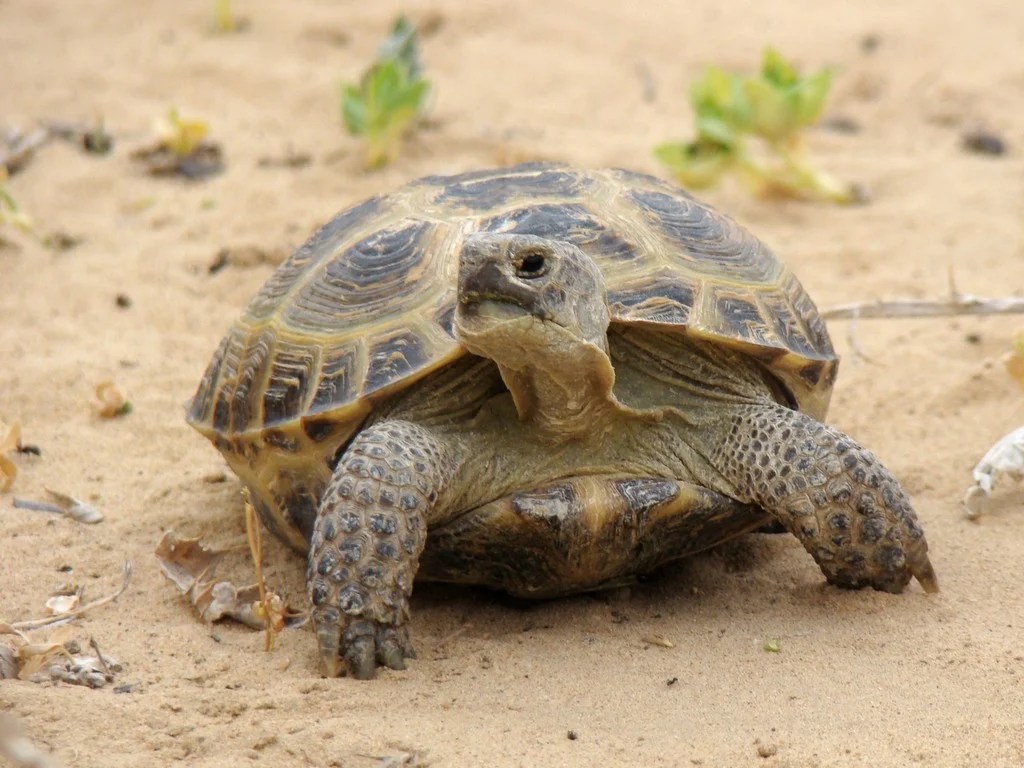
앞다리 발톱은 4개다. 다른 육지거북이 5개인 것과 대비되어 영어권에서 “four-clawed tortoise”라는 이름이 붙었다. 다만 이 형질을 다룬 1차 문헌은 확인하지 못했고, 널리 인용되는 근거는 2차 출처다.
두부에는 갈고리처럼 굽은 턱이 있고, 사지에는 크게 겹치는 각질 비늘이 덮여 있다. 뒤꿈치 쪽에는 박차 모양의 구조, 대퇴부에는 결절(thigh tubercle)이 있다. 전체적으로 굴을 파고 거친 지면을 다니는 데 맞춰진 몸이다.
꼬리 끝에는 단단한 각질 돌기가 있다. 복갑은 갑판마다 갈색이나 검은색 얼룩이 지고, 개체에 따라서는 거의 전면이 검게 나타나기도 한다.
암수 차이는 크게 두 가지로 나타난다. 수컷이 더 작고, 꼬리가 길며 발톱도 길다. 암컷은 꼬리가 짧고 굵으며 발톱이 짧다.
총배설강 형태도 다르다. 수컷은 꼬리 끝에 가까운 위치에 세로로 긴 슬릿 형태이고, 암컷은 꼬리 기부에 가까운 별표(asterisk) 형태다. 이 형질들은 널리 쓰이지만 출처는 2차 자료다.
체형과 이동성의 성적 이형을 정면으로 다룬 연구도 있다. Bonnet 등이 Biological Journal of the Linnean Society에 발표한 성적 이형 논문이 환경과 성선택이 체형·이동성에 미치는 영향을 다뤘으나, 이 문서 작성 시점에 서지 세부(권·쪽·DOI)를 확인하지 못해 결론을 인용하지 않는다.

크기
가장 신뢰할 만한 수치는 최대 배갑장 약 22 cm다. Turtles of the World 계열 데이터베이스가 제시하는 값이며, 여러 2차 출처도 “성체가 22 cm를 넘는 일은 드물다”는 표현으로 이와 일치한다.
일상적으로 만나는 크기는 그보다 작다. California Turtle & Tortoise Club은 일반적으로 15~20 cm, 드물게 23 cm를 넘는다고 적는다. 영문 위키백과는 전체 13~25 cm 범위에 암컷 15~25 cm, 수컷 13~20 cm를 든다.
체중은 출처 있는 수치를 확인하지 못했다. 사육 커뮤니티에서 도는 g 단위 값들은 근거를 추적할 수 없어 이 문서에 싣지 않는다.
크기의 성차에 관해서는 좋은 1차 문헌이 있다. Lagarde 등(2001)은 우즈베키스탄 야생 개체군을 대상으로 성장·성숙·개체 변이를 분석해 암컷이 더 늦게 성숙하고 그 결과 성숙 시점의 크기가 더 크다는 것을 보였다.
이 연구에서 더 흥미로운 결과는 유체기 성장률에는 암수 차이가 없었다는 점이다. 크기 차이는 성장 속도가 달라서가 아니라 성숙 시점이 달라서 생긴다.
또 하나. 성장이 빠른 개체일수록 더 작은 크기에서 성숙했다. 즉 이 종에서 성숙을 결정하는 것은 도달한 크기 자체가 아니라 성장률이다. 개체마다 먹이 자원 상황이 다르고, 그에 대한 반응으로 성숙 시점이 달라진다.
이는 야생 개체군에서 크기와 나이의 관계가 느슨하다는 뜻이기도 하다. 배갑 크기만으로 나이를 추정하는 것은 이 종에서 특히 위험하다.
행동
이 종의 행동을 한 문장으로 요약하면 “1년의 대부분을 땅속에서 보낸다”이다. 그리고 이 말은 비유가 아니라 야외 추적 연구의 결론이다.
Lagarde 등(2002)은 5년에 걸친 야외 연구에서 이 거북이 연간 9개월 이상을 지하에서 보내며, 봄에 실제로 채식할 수 있는 기간은 3개월이 채 되지 않는다고 보고했다. 논문 제목 자체가 “긴 도약 앞의 짧은 봄(A short spring before a long jump)”이다.
Lagarde 등(2003)은 여기에 한 겹을 더한다. 중앙아시아의 극한 기후가 활동을 연 3개월로 제한하는데, 그 활동기 안에서도 90%는 비활동 상태이며 실제 섭식에 쓰는 시간은 매우 적었다.
짧은 봄 동안 암수는 시간을 다르게 쓴다. 짝짓기철에 수컷은 구애 행동에 크게 투자하고, 암컷은 채식에 투자한다. 1년치 에너지를 몇 주 안에 확보해야 하는 암컷과, 그 기간에 짝을 찾아야 하는 수컷의 이해관계가 갈린 결과다.
공간 이용에서도 같은 분화가 나타난다. Lagarde 등(2003)의 또 다른 연구는 36개체를 라디오텔레메트리로 추적해 수컷은 좁은 범위를 집중적으로 순찰하고, 암컷은 한 방향으로 길게 이동해 더 넓은 면적을 쓴다는 것을 보였다.
휴면은 두 번 온다. 여름의 고온을 피하는 하면(aestivation)과 겨울의 저온을 피하는 동면(brumation)을 모두 수행하며, 둘 다 굴 안에서 이뤄진다. 봄의 활동기는 이 두 휴면 사이에 낀 짧은 창이다.
의외의 능력도 있다. 이 거북은 가파른 면을 오르는 등반 능력이 뛰어나다고 여러 출처가 기록한다. 낮고 둥근 배갑과 튼튼한 사지가 암석 지형을 넘는 데 유리하게 작동하는 것으로 보인다.
활동 시간
주행성이다. 다만 하루 안에서의 분포가 균등하지 않다.
Bondarenko와 Peregontsev(2019)는 이 종의 일주 활동이 이봉형(bimodal)이며, 오전 피크가 저녁 피크보다 크다고 보고했다. 연구자들은 하루의 활동과 체온조절을 8개 구간으로 나눠 기술했다.
이 관찰에는 실무적 함의가 있다. 논문이 명시적으로 지적하듯, 저녁 시간대만 조사하면 개체군 밀도를 과소평가하게 된다. 이 종의 개체군 조사 결과를 읽을 때는 조사 시간대를 함께 봐야 한다.
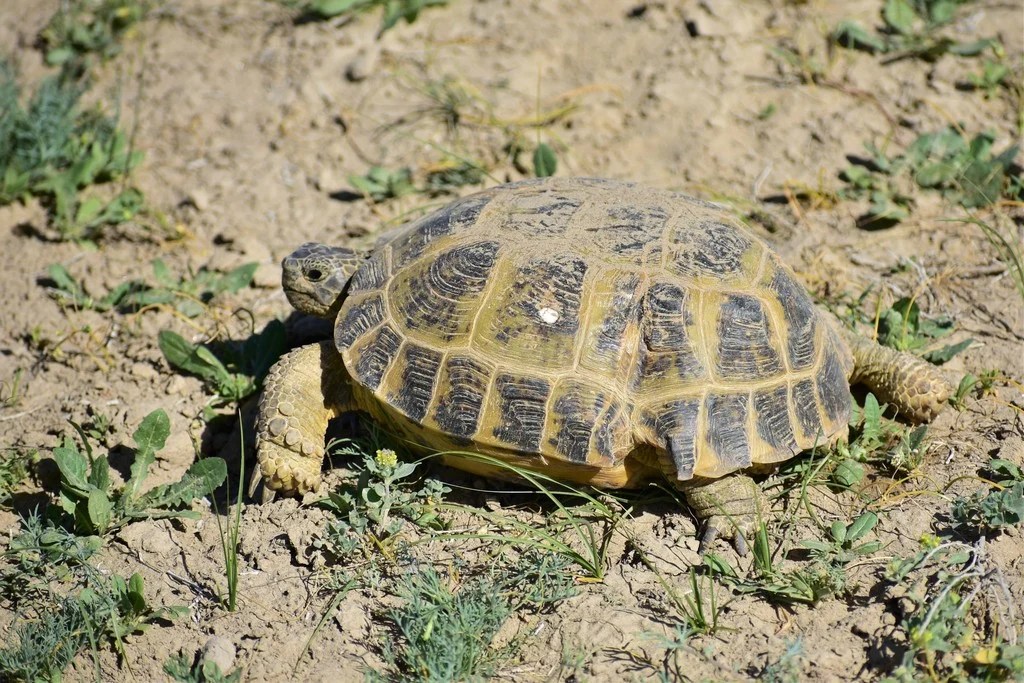
계절 패턴은 훨씬 극적이다. 대략 3월에서 5월 사이에 굴에서 나와 활동하고, 6~7월이 되면 지표온 상승으로 활동을 접고 하면에 들어가며, 겨울에는 동면한다.
앞서 본 대로 5월 중순부터 지표온이 지속적으로 40 °C를 넘는다. 이 시점이 활동기의 사실상의 종료 시점이다. 먹이가 남아 있어도 나올 수 없다.
굴에서 나오는 시점의 체온이 9.4 °C까지 내려가 있었다는 관찰은, 이 거북이 활동 가능한 시간대의 시작을 상당히 낮은 체온에서부터 잡는다는 것을 뜻한다. 짧은 창을 최대한 넓게 쓰려는 행동으로 읽힌다.
봄철 오전에 이 거북을 만날 확률이 가장 높고, 여름 한낮에는 넓은 서식지를 걸어도 한 마리도 보지 못할 수 있다. 같은 장소에서 계절만 달라져도 관찰 결과가 완전히 달라지는 종이다.
감각기관
이 항목은 러시안 육지거북 자체를 대상으로 한 감각 연구를 확인하지 못했다. 아래 내용은 육지거북 일반 수준의 지식이며, 종 특이 정보로 읽어서는 안 된다.
육지거북은 시각 의존도가 높은 동물로 알려져 있다. 색각과 관련해서는 근연종 연구가 참고가 된다. Pellitteri-Rosa 등(2010)은 헤르만 육지거북(Testudo hermanni)이 자연 자극과 인공 자극에서 색을 구별하는지를 실험으로 다뤘다. 다만 이 논문의 본문 결론은 확인하지 못했으므로 결과를 인용하지 않는다.
후각도 육지거북에서 중요한 감각으로 다뤄진다. 개체 인식과 먹이 탐색, 번식기 상호작용에서 화학 신호가 쓰인다고 보는 것이 일반적이다. 러시안 육지거북에서 이를 실험적으로 확인한 자료는 찾지 못했다.
청각은 거북 전반에서 저주파 대역에 치우친 것으로 알려져 있다. 외이도가 없고 고막이 피부로 덮여 있는 구조 때문이다.
굴을 파고 사는 생활을 생각하면 지면 진동 감지가 유용할 법하지만, 이 종에서 그런 능력을 다룬 연구는 확인되지 않았다. 추측으로 채우지 않는다.
정리하면, 이 항목에 대해 현재 알려진 바는 제한적이다. 러시안 육지거북은 야외 생태와 무역 통계에 관해서는 자료가 풍부한 반면, 감각 생리에 관해서는 종 특이 연구가 거의 비어 있는 종이다.
먹이
초식이다. 그리고 그 초식의 내용이 이 종에서 특히 흥미롭다.
Lagarde 등(2003)의 야외 관찰은 이 거북이 화본과 풀보다 독성 식물종을 선호해서 먹는다고 보고했다. 연구자들은 이를 방목 포유류와의 직접적인 먹이 경쟁을 회피하는 방향으로 해석했다.
중앙아시아 스텝은 오랜 기간 대규모 방목이 이뤄진 땅이다. 양과 염소가 먹지 않는 식물을 먹는 쪽으로 밀려난 것이라면, 이 거북의 식성은 단순한 취향이 아니라 경쟁의 흔적인 셈이다.
식물 종수 자체는 많다. Fauna & Flora는 야생에서 80종 이상의 식물을 먹는 것으로 기록되어 있으며 일부는 독성 식물이라고 적는다.
먹는 부위도 다양하다. 초본과 다육질 식물, 생초와 마른 풀, 잔가지, 꽃, 열매, 다육질의 잎과 줄기가 모두 포함된다.
섭식 전략은 철저히 기회주의적이다. 활동할 수 있는 짧은 기간 동안 가능한 한 많이 먹어 지방을 축적하고, 나머지 9개월을 그 저장분으로 버틴다.
구체적인 식물 속·종 수준의 목록은 이번 조사에서 확인하지 못했다. 지역별 식생이 다르므로 단일 목록으로 정리하기 어려운 항목이기도 하다.
포식자
야생 천적을 종 수준에서 명시한 1차 문헌은 확인하지 못했다. 이 항목에 관해 현재 정리된 지식은 제한적이다.
간접적인 근거는 있다. EU 연구 프로젝트 EFFACE 보고서는 이 종의 생후 1년 내 포식률을 70~90%로 기술한다. 다만 이 보고서도 어떤 포식자가 그 사망을 일으키는지는 제시하지 않는다.
부화체 크기가 3~5 cm 수준이라는 점을 생각하면, 이 시기의 개체는 스텝에 사는 상당수 육식 조류·포유류·파충류의 먹이 크기 범위에 들어간다. 성체가 되면 배갑이 대부분의 포식자에게 물리적 장벽이 된다.
우즈베키스탄 CITES 문서는 야생에서 유체 생존율이 1~3%인 반면, 사육 후 방사된 유체는 50~96%가 생존했다고 보고한다. 초기 사망률이 매우 높은 생활사라는 점은 이 대비에서 분명히 드러난다.
성체 단계에서 가장 큰 사망 요인은 자연 포식이 아닐 가능성이 높다. 뒤의 보전 상태 항목에서 보듯, 이 종의 성체는 사람에 의한 채집이라는 예외적으로 강한 압력을 받고 있다.
이 항목은 향후 문헌이 확인되면 보강할 대상으로 남긴다.
번식
번식 정보는 이 문서에서 불확실성이 가장 큰 항목이다. 아래 수치는 대부분 2차 출처에 기대고 있고, 출처끼리 서로 어긋난다.
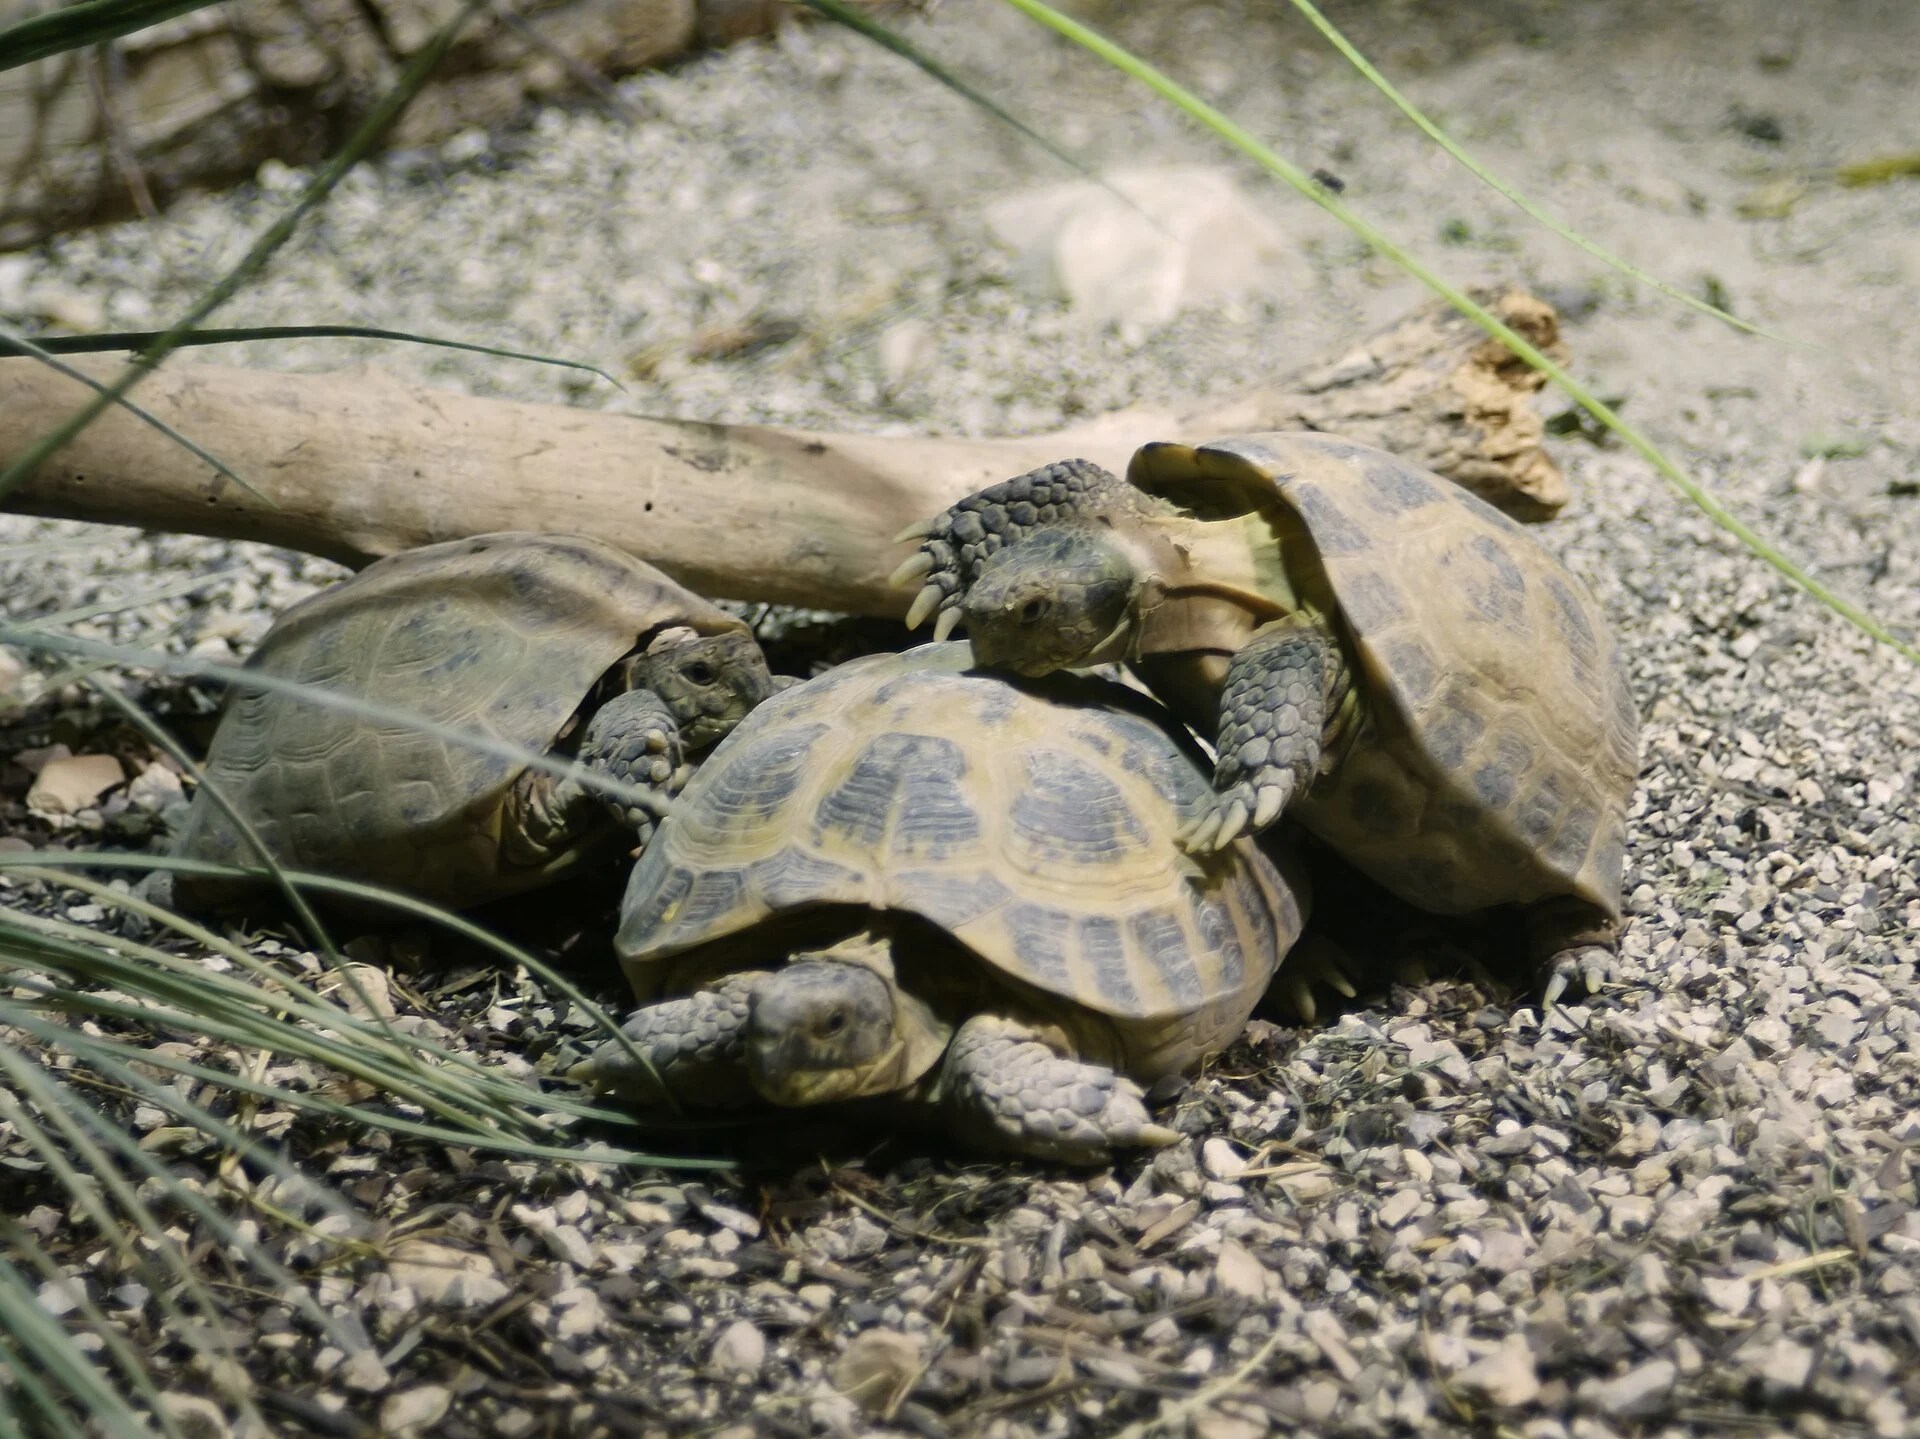
구애 행동은 비교적 잘 기술되어 있다. 수컷은 머리를 위아래로 흔들고(head bobbing), 암컷 주위를 원을 그리며 돌고, 암컷의 앞다리를 물어 움직임을 제한한다. 마운팅 중에는 고음의 소리를 낸다.
번식기 시간 배분의 성차는 앞서 본 대로다. Lagarde 등(2002)은 짝짓기철에 수컷이 성적 행동에, 암컷이 채식에 시간을 쓴다는 것을 정량적으로 보였다. 암컷에게 이 짧은 봄은 알을 만들 자원을 확보할 유일한 기회다.
클러치 크기는 출처마다 다르다. California Turtle & Tortoise Club은 클러치당 2~6개에 한 시즌 2회(가능하면 3회), EFFACE 보고서는 2~3개를 연 2~3회, Fauna & Flora는 시즌당 3회 이상이라고 적는다.
세 출처 모두 2차 자료이고 수치가 일치하지 않는다. 이 문서에서는 “문헌에 따라 클러치당 2~6개, 시즌당 2~3회 이상”이라는 범위로만 제시하고, 이 종의 야생 번식을 정량적으로 다룬 1차 문헌을 확인하지 못했음을 함께 밝힌다.
부화 기간도 마찬가지다. 야생에서 80~110일이라는 기술이 있으나 2차 출처다. 알의 길이·무게, 야생에서의 정확한 산란 월은 확인하지 못했다.
성결정 방식에 관해서는 특히 주의가 필요하다. 거북류 전반에서 온도의존성 성결정(TSD)이 잘 알려져 있고 Testudo 속에서도 보고되어 있지만, 러시안 육지거북을 대상으로 전이온도(pivotal temperature)를 보고한 논문은 확인하지 못했다. 사육 커뮤니티에 도는 구체적 온도 수치는 이 문서에서 다루지 않는다.
성장
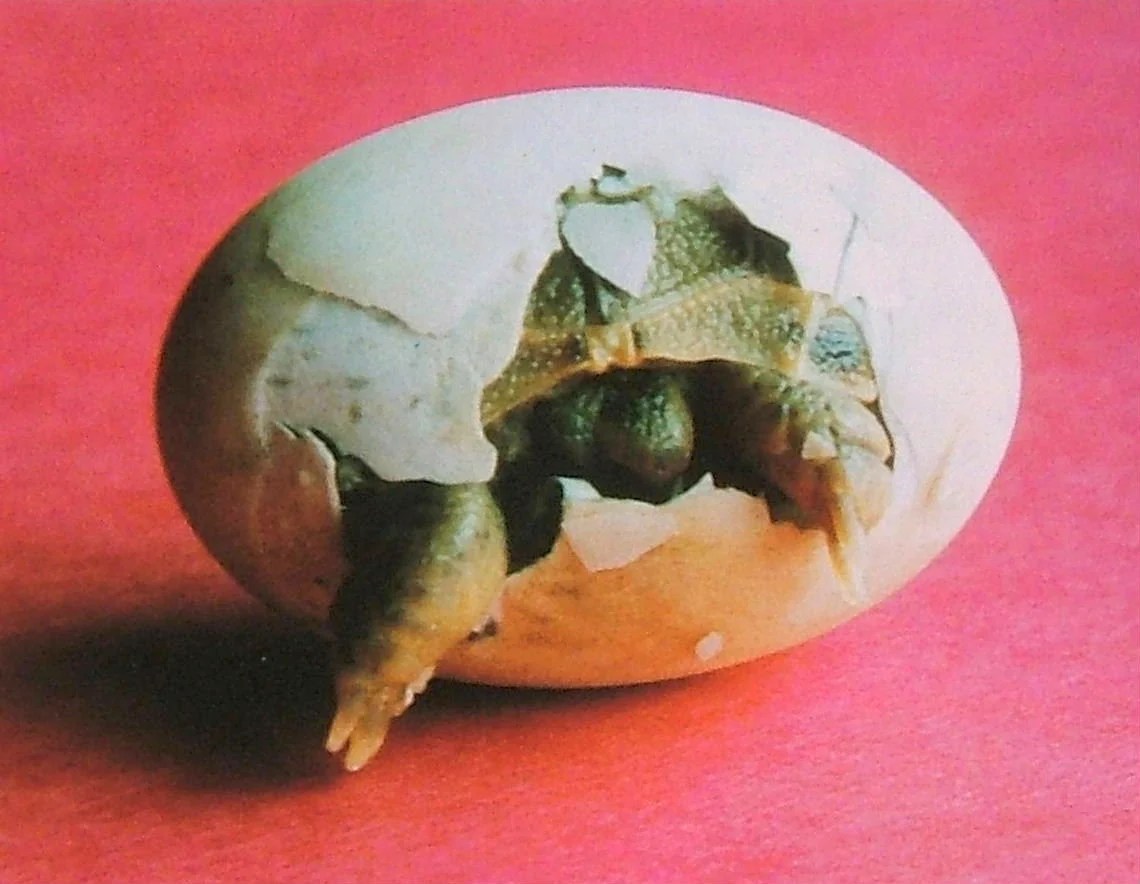
부화체 크기부터 출처가 갈린다. California Turtle & Tortoise Club은 32~34 mm를, Fauna & Flora는 약 5 cm를 든다. 두 값의 차이가 커서 단일 수치로 확정할 수 없다.
이후 성장은 느리다. 성적 성숙까지 대략 10년이 걸리고, 완전히 성장했다고 볼 수 있는 상태에는 20~30년이 지나야 도달한다는 기술이 여러 2차 출처에서 반복된다.
다만 앞서 크기 항목에서 본 Lagarde 등(2001)의 결론을 다시 가져올 필요가 있다. 이 종에서 성숙을 결정하는 것은 도달한 크기가 아니라 성장률이며, 개체 간·성 간 변이가 크다.
이 변이는 먹이 자원 가용성의 차이를 반영하는 것으로 해석된다. 활동기가 3개월 미만인 환경에서, 그 짧은 창에 얼마나 좋은 먹이터를 확보했는가가 개체의 성장 궤적을 갈라놓는다.
초기 생존율은 극히 낮다. 우즈베키스탄 CITES 문서 기준 야생 유체 생존율은 1~3% 수준이다. 성숙까지 10년이 걸리는 종에서 이 정도 초기 사망률은, 개체군이 성체 손실을 회복하는 데 매우 오랜 시간이 걸린다는 뜻이다.
이것이 뒤의 보전 항목과 직접 연결된다. 성체를 대량으로 채집하면 개체군은 빠르게 줄고 회복은 수십 년 단위로 느리다.
수명
AnAge 데이터베이스에는 Testudo horsfieldii와 Agrionemys horsfieldii 모두 항목이 없다. 두 표기로 모두 조회했으나 등재되어 있지 않았다.
2차 출처의 기술은 있다. Fauna & Flora는 40년 초과, 영문 위키백과는 최대 50년을 든다.
검증된 최장수 기록은 확인하지 못했다. 육지거북에서 흔히 인용되는 장수 수치들은 사육 개체의 불완전한 기록에 기대는 경우가 많고, 이 종도 예외가 아니다.
야생 개체의 수명은 더 알기 어렵다. 성장선을 세는 골연대학적 접근이 가능하겠지만, 이 종에서 그런 연령 구조 연구를 확인하지는 못했다.
확실하게 말할 수 있는 것은 성숙까지 10년, 완전 성장까지 20~30년이 걸리는 느린 생활사를 가진 동물이라는 점이다. 이 정도 속도라면 자연 수명이 수십 년 단위인 것은 자연스럽다.
수명 수치 자체보다 중요한 것은 그 함의다. 세대 시간이 길고 초기 사망률이 높은 종은 성체 사망률의 작은 증가에도 개체군이 민감하게 반응한다.
다른 종과의 관계
가장 자주 인용되는 구분점은 앞다리 발톱 4개다. 다른 Testudo 종은 앞발톱이 5개다. 단, 이 형질의 근거는 2차 출처다.
두 번째는 복갑 힌지의 부재다. T. graeca 암컷이나 T. marginata는 복부갑판과 대퇴갑판 사이가 약간 접히지만 이 종은 고정되어 있다. 다만 헤르만 육지거북도 힌지가 없으므로 이 형질 하나로 세 종을 모두 갈라낼 수는 없다.
세 번째는 배갑 비율이다. 러시안 육지거북의 배갑은 길이와 폭이 거의 같아 둥글다. 그리스 육지거북(T. graeca)이나 헤르만 육지거북(T. hermanni)의 길쭉한 배갑과 나란히 놓으면 바로 구분된다.
교잡 사례도 기록되어 있다. T. graeca ibera, T. hermanni boettgeri와의 교잡이 보고되었는데, 이들은 자연 분포권이 겹치지 않으므로 사육 환경에서 일어난 일이다. 교잡이 가능하다는 사실은 Agrionemys를 별개 속으로 볼 것인가라는 논쟁에서 “그만큼 멀지 않다”는 쪽 근거로 언급되기도 한다.
생태적으로는 대비가 더 크다. 지중해권 Testudo가 온화한 지중해성 기후에서 비교적 긴 활동기를 갖는 반면, 러시안 육지거북은 연 9개월 이상 지하 휴면에 연 3개월 미만 활동이라는 극단으로 갔다.
같은 속 안에서 이 정도의 생활사 분화가 일어난 것은, 이 종이 Testudo가 도달한 가장 혹독한 환경에 자리 잡았기 때문이다. 여름 지표온 40 °C와 겨울 혹한을 한 장소에서 모두 견뎌야 하는 조건은 지중해 연안에는 없다.
herp.blog에서 다루는 다른 건조지 파충류와 비교해 보는 것도 유용하다. 유로마스틱스는 같은 건조지 초식성이지만 도마뱀이고 활동기가 훨씬 길다. 비어디 드래곤은 호주 건조지의 잡식성 아가마다. 같은 건조 환경이 계통이 다른 파충류에게 각각 어떤 해법을 강요했는지 견주어 보면 흥미롭다.
보전 상태
IUCN 등급은 취약(Vulnerable, VU), 기준은 A2d다. 평가 주체는 IUCN SSC 육지·담수거북 전문가그룹이다.
그런데 평가 연도가 1996년이다. 30년 동안 재평가가 이뤄지지 않았다. Fauna & Flora는 이 점을 명시적으로 지적하면서, 그 사이 개체수는 급감한 것으로 알려져 있다고 덧붙인다.
CITES 부속서 II에 등재되어 있다. 상업 거래가 허용되되 수출국이 쿼터를 설정하고 무역이 개체군에 해를 끼치지 않는다는 판정을 요구하는 등급이다.
거래 규모는 매우 크다. EFFACE 집계에 따르면 2006~2014년 연간 총 거래량은 67,001~102,523개체였다. 우즈베키스탄의 쿼터는 1998~99년 25,000~35,000에서 2014년 100,000(야생 5만 + 목장사육 5만)까지 늘었다.
Bondarenko와 Peregontsev(2017)는 우즈베키스탄에서 합법·불법을 합쳐 연간 약 10만 개체가 반출된다고 추정했다. 앞서 본 대로 고밀도 지역이 서식범위의 0.6%뿐인 종에서 이 규모는 가볍지 않다.
개체군 밀도의 장기 변화는 그 결과를 보여준다. 카자흐스탄에서는 1950년대 헥타르당 5~72마리에서 2000년 3.9~10.3마리로, 중국에서는 1960년대 km²당 4,136 ± 2,162마리에서 1990년대 6.04마리로 떨어졌다. 중국 수치는 1950년대의 약 1% 수준이다.
가장 최근의 지적은 무역 신고의 신뢰성 문제다. Bondarenko(2022)는 우즈베키스탄의 채집 역사를 정리하면서, 2018~19년 사육번식 수출 쿼터가 근거 없이 증액되었고 번식시설의 실제 생산능력이 신고량에 못 미친다는 점을 들어, 야생 포획 유체를 사육번식 개체로 허위 신고하고 있다고 결론지었다. 그는 수출의 잠정 중단과 밀렵 처벌 강화를 권고했다.
주요 위협은 정리하면 네 가지다. ① 애완동물 거래를 위한 남획(1970년대 이래 최대 위협), ② 야생 포획 개체의 사육번식 허위 신고, ③ 개체군 조사 없는 쿼터 증가, ④ 1950~80년대 농지 개발에 의한 서식지 상실. 첫 세 가지는 모두 사람이 만든 서류 위에서 일어나는 문제다.
흥미로운 연구
Bondarenko (2022) — 우즈베키스탄 채집사와 개체군 영향
Current Studies in Herpetology 22(3-4): 95–104. DOI 10.18500/1814-6090-2022-22-3-4-95-104
1930~50년대 가축 사료용 채취에서 시작해 1960년대 상업 거래 개시, 1990년대 말 급증을 거쳐 2017년 합법 채취가 연 8만 5천 개체에 이른 과정을 정리했다. 채집지 개체군의 감소와 연령구조 변형을 보고하고, 사육번식 신고의 상당 부분이 야생 포획 개체라고 결론지었다.
Donini (2024) — 플로리다 도입 개체군과 번식 가능성
Reptiles & Amphibians 31(1): e20927. DOI 10.17161/randa.v31i1.20927
플로리다 남서부에서 이 종의 야외 기록 7건(2011~2022)을 정리하고, EDDMapS 기준 다른 5개 카운티의 7건을 추가로 확인했다. 2021년 6월 10일 갓 부화한 개체가 발견되어 미국 내 자연번식 가능성을 시사한다.
Bondarenko & Peregontsev (2019) — 열생물학과 일주 활동
Current Studies in Herpetology 19(1-2): 17–30. DOI 10.18500/1814-6090-2019-19-1-2-17-30
이 문서의 서식 환경·활동 시간 항목의 정량적 근거다. 활동 개체의 76%가 28.0~35.9 °C 구간에 있으며, 5월 중순 이후 지표온이 40 °C를 넘어 활동이 불가능해진다는 것을 보였다. 저녁 조사만으로는 밀도를 과소평가한다는 방법론적 지적도 포함한다.
Bondarenko & Peregontsev (2017) — 우즈베키스탄 분포
Current Studies in Herpetology 17(3-4): 124–146. DOI 10.18500/1814-6090-2017-17-3-4-124-146
287개 조사지점을 근거로 국토의 약 67%에 분포하되 고밀도 지역은 서식범위의 0.6%에 불과함을 보였다. 넓은 분포와 낮은 밀도가 공존하는 구조를 정량화했다.
Lagarde 등 (2002) — “긴 도약 앞의 짧은 봄”
Canadian Journal of Zoology 80: 493–502. DOI 10.1139/z02-032
5년간의 야외 연구로 연간 9개월 이상 지하 체류와 3개월 미만의 채식 기간을 확인했다. 이 종의 생활사를 규정하는 가장 널리 인용되는 연구다.
Vasilyev 등 (2014) — Testudo vs Agrionemys 분화
Russian Journal of Genetics 50(10): 1060–1074. DOI 10.1134/S1022795414090154
mtDNA 12S rRNA와 핵 RAPD 표지로 두 속의 분리를 지지했다. 분류 논쟁을 다룰 때 반대편 근거로 인용할 수 있는 1차 문헌이다.
2020년 이후 이 종을 다룬 PubMed 등재 논문은 대부분 사육 개체의 수의학 연구(헤르페스바이러스, 진드기 Hyalomma aegyptium, 종양 등)다. 자연사 문서의 범위 밖이므로 여기서는 다루지 않는다.
자주 묻는 질문
러시안 육지거북은 1년에 얼마나 활동하나요?
5년에 걸친 야외 추적 연구(Lagarde 등 2002)는 이 거북이 연 9개월 이상을 굴에서 보내고, 실제로 채식할 수 있는 기간은 3개월이 채 되지 않는다고 보고했습니다. 여름에는 하면, 겨울에는 동면에 들어갑니다.
러시안 육지거북과 호스필드 육지거북은 다른 종인가요?
같은 종(Testudo horsfieldii)의 다른 이름입니다. 스텝 거북, 러시안 토터스, 아프간 육지거북도 모두 같은 종을 가리킵니다.
왜 어떤 문헌은 Agrionemys라고 쓰나요?
1966년 Khozatsky와 Mlynarski가 제안한 별개 속명입니다. 현재 주류 분류는 이를 Testudo 속의 아속으로 처리하지만, 별개 속으로 인정하자는 견해도 남아 있습니다. 문헌을 검색할 때는 두 이름을 모두 써야 합니다.
앞발톱이 정말 4개인가요?
다른 Testudo 종이 앞발톱 5개인 것과 달리 4개로 기술되며, 영어권 별칭 “four-clawed tortoise”의 유래입니다. 다만 이 형질을 정면으로 다룬 1차 문헌은 확인되지 않았고 근거는 2차 출처입니다.
야생 개체군 상태는 어떤가요?
IUCN 취약(VU)이지만 평가가 1996년에 멈춰 있습니다. 그 사이 연간 약 10만 개체 규모가 원산지에서 반출됐고, 2022년 연구는 사육번식 수출 신고의 상당 부분이 실제로는 야생 포획 개체라고 지적했습니다.
관련 종
- 유로마스틱스 — 건조지에 사는 초식성 파충류라는 점에서 생태적 대응 관계가 흥미롭다
- 비어디 드래곤 — 호주 건조지의 잡식성 아가마
- 블루텅 스킨크 — 지상성·잡식성 대형 스킨크
- 차이니즈 워터 드래곤 — 습윤 환경에 자리 잡은 아가마와의 대비
관련 내부 링크
- 파충류란 무엇인가 — 파충류 전체를 다루는 상위 문서 (파충류 → 거북 → 육지거북 → 러시안 육지거북)
- 파충류 위키 — 종별 탐색 허브
- 종 비교 — 종별 특성 비교
- 파충류 용어사전 — 하면·동면·배갑·복갑 등 용어
Care 문서: 미작성. 이 문서는 야생 자연사만 다룹니다. 사육장·온도·습도·조명·바닥재·급여 등 사육 정보는 포함하지 않습니다.
참고문헌
- Reptile Database, Testudo horsfieldii — reptile-database.reptarium.cz
- Turtles of the World / Naturalis, Testudo horsfieldii
- Lagarde F. et al. (2001) Sexual size dimorphism in steppe tortoises (Testudo horsfieldi): growth, maturity, and individual variation. Canadian Journal of Zoology 79(8): 1433–1441. DOI 10.1139/z01-097
- Lagarde F. et al. (2002) A short spring before a long jump: the ecological challenge to the steppe tortoise (Testudo horsfieldi). Canadian Journal of Zoology 80: 493–502. DOI 10.1139/z02-032
- Lagarde F. et al. (2003) Sex divergence in space utilisation in the steppe tortoise (Testudo horsfieldi). Canadian Journal of Zoology 81: 380–387. DOI 10.1139/z03-023
- Lagarde F. et al. (2003) Ecography 26(2): 236–242. DOI 10.1034/j.1600-0587.2003.03365.x
- Bondarenko D.A. & Peregontsev E.A. (2017) Current Studies in Herpetology 17(3-4): 124–146. DOI 10.18500/1814-6090-2017-17-3-4-124-146
- Bondarenko D.A. & Peregontsev E.A. (2019) Thermal Biology and Daily Activity of Central Asian Tortoise. Current Studies in Herpetology 19(1-2): 17–30. DOI 10.18500/1814-6090-2019-19-1-2-17-30
- Bondarenko D.A. (2022) History of Central Asian tortoise harvesting in Uzbekistan. Current Studies in Herpetology 22(3-4): 95–104. DOI 10.18500/1814-6090-2022-22-3-4-95-104
- Donini J. (2024) Regional records and reproductive potential of the non-indigenous Central Asian Tortoise in southwestern Florida. Reptiles & Amphibians 31(1): e20927. DOI 10.17161/randa.v31i1.20927
- Vasilyev V.A. et al. (2014) Differentiation of tortoises of the genera Testudo and Agrionemys. Russian Journal of Genetics 50(10): 1060–1074. DOI 10.1134/S1022795414090154
- van der Kuyl A.C. et al. (2002) Phylogenetic Relationships among the Species of the Genus Testudo. Molecular Phylogenetics and Evolution 22(2): 174–183. DOI 10.1006/mpev.2001.1052
- CITES SC78 Doc. 35.1 Annex 5 — 우즈베키스탄 T. horsfieldii 무역 보고
- Fauna & Flora, Steppe tortoise — fauna-flora.org
- California Turtle & Tortoise Club, Russian Tortoise — tortoise.org
인용하지 않은 것: Fritz & Bininda-Emonds (2007)와 Bonnet 등의 성적 이형 논문은 서지만 확인되고 본문을 열람하지 못해 결론을 인용하지 않았다. Lagarde et al. 2012의 관목 그늘 연구는 모로코의 T. graeca를 대상으로 한 것이므로 이 종과 무관하다.
사진 출처 · 라이선스
- 야생 개체(바이코누르) — Yuriy75 · CC BY-SA 3.0 · Wikimedia Commons
- 배갑 — Norbert Kaiser · CC BY-SA 2.5 · Wikimedia Commons
- rustamovi 아종 표기 개체 — Massimo Lazzari · CC BY-SA 3.0 · Wikimedia Commons
- 교미 — Hans Hillewaert · CC BY-SA 4.0 · Wikimedia Commons
- 부화 / 유체 — Richard Mayer · CC BY-SA 3.0 · Wikimedia Commons
- 부하라 개체 — Jamshid Nurkulov · CC BY-SA 4.0 · Wikimedia Commons
- 측면 대표 이미지 — Drtrotsky · CC0 1.0 · Wikimedia Commons
- 굴 입구(타지키스탄) — Alexander A. Fomichev · CC BY 4.0 · iNaturalist
- 복갑 / 봄 활동기 — Kudaibergen Amirekul · CC BY-SA 4.0 · iNaturalist
- 포리시 두 개체 — Вячеслав Юсупов · CC BY 4.0 · iNaturalist
- 두부 정면 — Юрий Данилевский · CC BY 4.0 · iNaturalist
- 관목 경관 — kirinzi · CC BY 4.0 · iNaturalist
함께 읽을 종


문서 수정 제안
오류라고 생각되는 문장과 확인 가능한 출처를 알려주세요. 제안은 자동 공개되지 않습니다.