최종 수정 2026.10.12 · 운영·편집 silveston · 전문 자격 없는 취미 운영자의 자료 정리
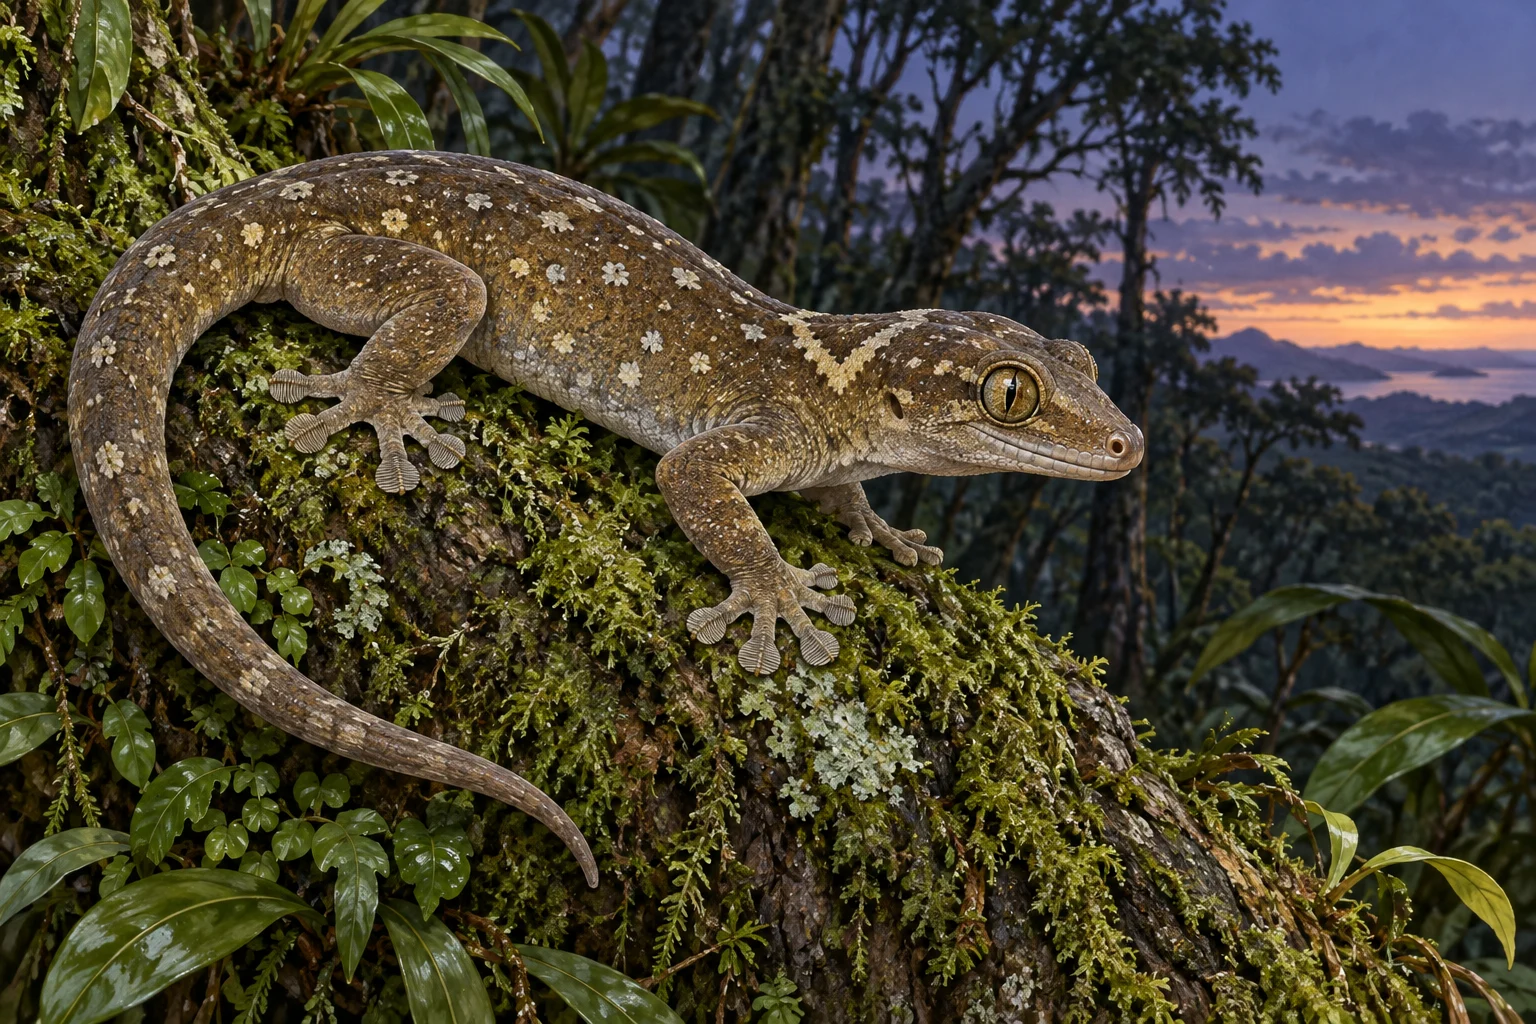
뉴칼레도니아 남부의 밤숲에서 사라신게코는 나무 위에만 머무는 전형적인 수목성 게코처럼 행동하지 않는다. 굵은 줄기와 낮은 가지를 타다가 낙엽이 쌓인 지면으로 내려와 먹이를 찾고, 다시 나무 구멍과 느슨한 껍질 아래로 사라진다. 크레스티드게코와 가까운 친척이지만 머리의 볏은 없고, 매끈하고 길쭉한 몸과 감아 잡는 꼬리가 먼저 눈에 들어온다. ‘거대 게코’라는 이름은 압도적인 크기보다 뉴칼레도니아의 큰 도마뱀붙이 무리를 가리키는 역사적 맥락에서 이해해야 한다.
| 항목 | 내용 |
|---|---|
| 학명 | Correlophus sarasinorum (Roux, 1913) |
| 영명 | Sarasin’s Giant Gecko · Roux’s Giant Gecko · Prony Giant Gecko |
| 과 | Diplodactylidae |
| 분포 | 뉴칼레도니아 그랑테르 남부의 단절된 숲 조각 |
| 활동 | 야행성, 수목과 지면을 모두 이용 |
| 보전 | IUCN 취약(Vulnerable) |
이름 뒤에 숨은 두 사람과 한 번의 큰 분류 개정
Jean Roux는 1913년 이 종을 Rhacodactylus sarasinorum으로 기술했다. 종소명 sarasinorum은 뉴칼레도니아 자연사를 조사한 스위스 동물학자이자 사촌인 Fritz Sarasin과 Paul Sarasin 두 사람을 함께 기린 복수 소유격이다. 영명에 Roux와 Sarasin이 번갈아 등장하는 이유도 이 명명사와 관련된다. 오래된 사육서, 박물관 표본, 거래 기록은 여전히 Rhacodactylus라는 조합을 쓰므로 동의어를 함께 검색하지 않으면 중요한 자료를 놓칠 수 있다.
Bauer와 동료들은 2012년 뉴칼레도니아 ‘거대 게코’의 형태와 분자 계통을 재검토하면서 Correlophus를 되살리고 이 종을 새 조합 C. sarasinorum으로 옮겼다. 같은 개정에서 크레스티드게코는 C. ciliatus가 되었고, 차후 북쪽 벨레프 제도의 C. belepensis가 구분되었다. 이름 변화는 유행어를 바꾼 일이 아니라 서로 닮은 큰 게코들이 한 덩어리가 아니며 진화 계통이 갈라져 있음을 반영한 결과다.

매끈한 얼굴, 넓은 발가락, 감아 잡는 꼬리
성체는 대체로 전체 길이 22–28cm 안팎으로 소개되지만 개체군과 측정 방식, 꼬리 상태에 따라 차이가 크다. 몸통 길이만 비교할 때와 재생 꼬리까지 포함할 때 수치는 달라진다. 머리는 크레스티드게코처럼 눈 위 볏이 발달하지 않아 부드러운 윤곽을 보이고, 몸은 비교적 길고 단단하다. 갈색·회색·황갈색 바탕에 옅은 반점이나 목덜미의 V자 무늬가 나타날 수 있지만, 색 하나만으로 산지나 혈통을 확정할 수는 없다.
발가락 끝의 넓은 접착판은 수직 줄기와 잎을 붙잡고, 발톱은 거친 껍질에서 보조 고정점을 만든다. 꼬리는 가지를 감는 데 쓰이는 반감는꼬리로, 도약 전 균형을 잡고 좁은 통로를 건널 때 안전줄 역할을 한다. 위험할 때 꼬리를 자를 수 있지만 재생 꼬리는 원래와 같은 형태를 완전히 되찾지 못할 수 있다. 꼬리 절단은 자연스러운 방어법이지 다뤄도 되는 가벼운 사고가 아니며, 관찰자는 붙잡기보다 숨을 선택할 여지를 주어야 한다.

일곱 지점에서 알려진 남부의 단절된 숲
뉴칼레도니아 생물다양성 자료 Endemia는 이 종을 그랑테르섬 남부의 매우 제한된 범위에서 알려진 동물로 정리하며, 기록된 일곱 지점은 서로 고립된 아개체군으로 해석된다. 프롱이·플렌데락 일대의 닫힌 저지대 숲과 협곡 숲 조각이 핵심이며, 아직 조사되지 않은 숲에 추가 개체군이 있을 가능성도 있다. 그렇다고 빈 지도 부분을 실제 분포로 채워서는 안 된다. 관찰 공백과 서식 공백은 다른 문제이기 때문이다.
서식지는 단순히 습도가 높은 나무숲이 아니다. 낮에는 나무구멍, 헐거운 껍질, 잎이 겹친 곳처럼 온도 변화가 작고 몸을 완전히 감출 수 있는 미세공간이 중요하다. 밤에는 줄기·가지·관목·지면을 잇는 연속된 동선이 먹이 탐색과 짝 찾기를 가능하게 한다. 숲 면적이 남아 있어도 도로와 채굴지, 화재 흔적이 그 사이를 자르면 밤에 이동할 수 있는 다리가 사라지고 각 개체군의 회복력도 낮아진다.

나무 위의 게코가 땅으로 내려오는 이유
사라신게코는 야행성이며 Endemia 자료는 밤에 줄기와 가지에서 활동하는 수목성 동물로 설명한다. 그러나 오래된 현장 관찰과 종 개요에는 낙엽 아래나 느슨한 나무껍질 밑에서 발견되는 사례, 지면을 이용하는 행동도 함께 기록된다. 이는 ‘수목성’과 ‘지상성’ 중 하나를 고르는 문제가 아니다. 나무는 낮 휴식처와 안전한 이동축을 제공하고, 지면은 절지동물과 떨어진 과실을 만날 수 있는 넓은 먹이 장소가 된다.
활동을 시작한 개체는 큰 눈과 후각, 미세한 움직임을 이용해 먹이를 찾는다. 넓은 접착 발가락은 줄기를 빠르게 건너게 하지만 사냥 방식은 장거리 추격보다 짧은 접근과 돌진에 가깝다. 위협을 느끼면 몸을 낮추고 숨거나, 입을 벌리고 물어 방어할 수 있다. 야행성 게코가 낮에 움직이지 않는 모습은 정상적인 휴식일 수 있으므로 활동성은 조명 시간대와 함께 해석해야 한다.

과일과 절지동물을 잇는 기회주의적 식단
야생 식단을 수치로 세밀하게 분석한 연구는 많지 않지만, 현장 개요와 근연종 지식은 곤충·거미 같은 절지동물과 과실을 함께 이용하는 잡식·과식성 경향을 뒷받침한다. 과일을 먹는다는 말은 달콤한 과육만 찾는다는 뜻이 아니다. 숲의 과실에는 수분과 당, 섬유질이 있고 주변에는 초파리와 작은 무척추동물이 모인다. 한 번의 먹이 선택이 식물 자원과 동물성 단백질을 동시에 연결할 수 있다.
계절과 장소에 따라 먹이 가용성은 달라지므로 특정 곤충 한 종류나 과일 한 종류를 ‘자연식’으로 고정하면 야생의 원리를 거꾸로 적용하게 된다. 야생 개체는 이용 가능한 먹이를 바꾸지만, 사육 개체는 사람이 제공한 선택지 안에서만 먹는다. 이 차이는 사육 식단에서 완전식과 여러 먹이곤충을 번갈아 제공해야 하는 이유가 되지만, 야생에서 무엇을 몇 퍼센트 먹는지 모르는 상태에서 정밀 비율을 사실처럼 제시해서는 안 된다.
두 알, 숨겨진 둥지, 느린 생활사
사육 및 종 개요 자료에서 암컷은 대개 한 번에 두 개의 알을 부드럽고 촉촉한 바닥에 묻는 것으로 알려져 있다. 부화까지 걸리는 시간은 온도와 수분 조건에 따라 달라져 하나의 숫자로 고정할 수 없다. 알을 낳는다는 사실보다 중요한 것은 작은 산란수가 반복되는 전략과 산란 장소의 안정성이다. 지면을 이용하는 암컷에게 낙엽과 토양은 단순한 배경이 아니라 다음 세대가 시작되는 공간이다.
야생에서 짝짓기 시기, 산란 간격, 어린 개체 생존률을 장기간 추적한 자료는 제한적이다. 따라서 사육 번식 경험을 곧바로 야생 생활사로 번역해서는 안 된다. 어린 개체는 몸집이 작아 수분과 온도 변화에 민감하고, 더 작은 먹이와 촘촘한 은폐 공간을 이용할 가능성이 크다. 생활사 공백은 흥미로운 추측의 허가증이 아니라 조사 우선순위를 보여 주는 표시다.

크레스티드게코와 닮았지만 같은 생활을 하는 것은 아니다
Correlophus속에서 가장 익숙한 친척은 크레스티드게코 C. ciliatus다. 두 종 모두 접착 발가락과 감는 꼬리, 과실과 무척추동물을 이용하는 경향을 보이지만 외형과 분포는 뚜렷이 다르다. 사라신게코는 눈 위 볏이 없고 더 매끈하며, 알려진 분포가 그랑테르 남부의 숲 조각에 집중된다. 크레스티드게코의 인기 사육법을 그대로 복사하면 사라신게코의 더 넓은 동선과 종별 행동 차이를 놓치기 쉽다.
가고일게코 Rhacodactylus auriculatus는 머리의 돌기와 더 짧고 단단한 인상이 두드러지고, 리치아누스게코 R. leachianus는 훨씬 큰 몸과 다른 음성·영역 행동으로 유명하다. 외형이 비슷하다는 이유로 이들을 한 관리표에 넣거나 교잡을 시도하는 것은 분류와 복지를 모두 훼손한다. 최근의 분류 개정은 각각의 계통과 지역 개체군을 별도의 보전 단위로 보는 이유를 강화했다.

불·광산·침입종이 작은 숲 조각을 압박한다
IUCN 평가는 사라신게코를 취약(Vulnerable)으로 분류하며, Endemia는 제한되고 단절된 분포와 서식지 면적·질의 지속적 하락을 핵심 문제로 든다. 산불은 닫힌 숲을 관목지로 바꾸고, 니켈 채굴과 기반 시설은 숲 조각과 이동로를 제거한다. 도입된 유제류는 하층식생과 토양을 바꾸며, 개미·설치류·고양이 같은 침입동물은 알·어린 개체·먹이망에 직접 또는 간접 영향을 줄 수 있다.
일부 개체군이 보호지역 안에 있고 특정 지점에서는 비교적 흔하더라도 전체 개체군이 안전하다는 뜻은 아니다. 일곱 개의 작은 섬처럼 고립된 아개체군은 한 번의 큰 화재나 개발에 취약하며, 정량적인 개체수 추세 자료도 충분하지 않다. ‘보인다’와 ‘안전하다’를 구분하고, 새 기록의 정확한 위치를 무분별하게 공개하지 않는 태도가 필요하다.
인간과의 관계: 희귀함을 소유 욕구로 바꾸지 않기
국제 사육계에는 오래된 사육 혈통이 존재하지만, 판매명과 모프명은 합법적 출처나 정확한 종 동정을 자동으로 보증하지 않는다. 구매 전에는 현재 학명과 과거 동의어, 번식 기록, 부모 정보, 수입·양도 서류를 함께 확인해야 한다. CITES 등재 여부만으로 합법성을 판단해서도 안 된다. 수출국 규정, 한국의 수입·검역·야생생물 관련 요건, 거래 시점의 최신 법령이 별도로 적용될 수 있다.
이 종의 자연사를 아는 목적은 희귀 동물 목록을 늘리는 데 있지 않다. 작은 분포, 숲과 지면을 잇는 생활, 아직 비어 있는 생태 자료를 이해하면 왜 출처가 분명한 사육 개체와 보전 연구가 중요한지 알 수 있다. 사육을 고려한다면 먼저 사라신게코 사육가이드에서 공간·온도·습도·식단 요구와 장기 관리 책임을 확인해야 한다.
밤숲에서 이 동물을 찾는 방법이 연구 결과를 바꾼다
야행성 게코의 분포 조사는 낮에 나무를 훑는 방식만으로는 충분하지 않다. 해가 진 뒤 눈의 반사광을 찾는 시각조사, 줄기와 가지를 따라 이동하는 개체를 기록하는 시간제 조사, 나무껍질과 낙엽 아래의 은신처 확인을 조합해야 한다. 같은 숲이라도 비 직후, 건조한 밤, 달이 밝은 밤에 탐지 확률이 달라질 수 있다. 관찰 수가 적다는 결과는 실제 개체수가 적어서일 수도 있고, 조사 시간이 활동 시간과 맞지 않았기 때문일 수도 있다.
지면을 이용하는 행동은 조사자의 시선 높이에도 영향을 받는다. 머리 위 가지에만 손전등을 비추면 낮은 관목과 낙엽 위의 개체가 빠지고, 반대로 바닥만 뒤지면 나무 구멍에서 쉬는 개체를 놓친다. 사라신게코의 ‘나무와 지면을 잇는’ 생활은 조사 설계에도 수직 층을 요구한다. 기록에는 높이, 기질, 온습도, 시간, 날씨를 함께 남겨야 단순한 위치 점이 행동 자료로 바뀐다.
큰 눈이 보는 밤과 사람이 만드는 빛
큰 눈과 세로 동공은 어두운 숲에서 미세한 빛을 모으는 데 유리하다. 낮에는 동공을 좁혀 들어오는 빛을 제한하고, 밤에는 넓게 열어 움직임을 감지한다. 게코류는 움직이는 눈꺼풀 대신 투명한 안경비늘이 눈을 덮어 혀로 표면을 닦는다. 이 구조는 가까이에서 보면 독특하지만, 강한 플래시와 지속 조명은 야간 행동을 바꾸고 포식자에게 위치를 드러낼 수 있어 현장 촬영은 짧고 약하게 해야 한다.
숲 가장자리의 인공조명은 곤충을 모아 단기적으로 먹이가 늘어난 것처럼 보이게 할 수 있지만, 빛에 끌린 먹이망과 어둠을 필요로 하는 포식·회피 행동을 동시에 바꾼다. 밝아진 길과 광산 시설은 단순한 조명이 아니라 밤 서식지를 잘라 놓는 경계가 될 수 있다. 이 종의 보전에서는 숲의 면적뿐 아니라 어둠의 연속성과 야간 이동 통로도 평가해야 한다.
기후 변화와 화재가 만드는 느린 압력
작고 단절된 분포에서는 기온 상승이나 강수 패턴 변화가 모든 지점에 같은 방식으로 나타나지 않는다. 골짜기 숲은 수분을 더 오래 유지할 수 있지만, 건조 기간이 길어지면 낙엽과 가장자리가 불에 타기 쉬워진다. 한 번의 화재 뒤 숲이 다시 자라도 큰 나무의 구멍, 두꺼운 껍질, 연결된 가지가 회복되기까지는 오랜 시간이 걸린다. 면적만 빠르게 초록색으로 돌아왔다고 원래의 미세서식지가 복구된 것은 아니다.
장기 모니터링은 개체수뿐 아니라 숲 구조와 화재 이력, 침입종, 야간 기후를 함께 추적해야 한다. 같은 지점을 같은 계절과 조사시간에 반복하면 탐지 편향을 줄일 수 있고, 유전 자료는 고립된 아개체군 사이의 교류 여부를 밝힐 수 있다. 아직 모르는 점이 많다는 사실은 보호를 미룰 이유가 아니라, 되돌릴 수 없는 서식지 손실 전에 보수적으로 관리해야 할 이유다. 개체와 숲을 따로 보지 않는 통합 조사가 필요하다.
소리 없는 동물처럼 보여도 감각의 세계는 풍부하다
사라신게코의 야생 음성 행동은 리치아누스게코만큼 널리 기록되지 않았고, ‘울지 않는다’고 단정할 근거도 충분하지 않다. 많은 게코는 짧은 찍음·삑 소리나 몸 움직임, 접촉, 냄새 표지로 의사소통한다. 사람이 듣지 못했다는 사실은 신호가 없다는 뜻이 아니다. 특히 짝과 경쟁자가 가까운 번식기에는 자세, 꼬리 움직임, 접근 속도 같은 시각·촉각 신호가 의미를 가질 수 있다.
혀는 먹이를 삼키는 도구일 뿐 아니라 주변 표면과 공기의 화학 정보를 모으는 역할을 한다. 나무껍질과 가지에 남은 냄새는 같은 종의 존재, 최근 지나간 먹이, 익숙한 은신처를 알려 줄 수 있다. 그래서 사육장 전체를 강한 향의 세제로 한꺼번에 씻거나 모든 장식을 자주 교체하면 사람 눈에는 깨끗해 보여도 동물에게는 익숙한 지도가 사라진다. 야생에서도 냄새와 표면 질감은 어둠 속 길찾기의 중요한 일부일 가능성이 높다.
발바닥 접착은 단순히 끈적이는 물질로 작동하지 않는다. 발가락 패드의 미세한 구조가 표면과 매우 가까이 접촉하면서 힘을 만들고, 발가락을 특정 방향으로 굽혔다 펴며 붙고 떨어진다. 젖고 미끄러운 유리, 먼지, 피부 손상은 접착 성능을 떨어뜨릴 수 있다. 나무껍질·코르크·잎처럼 질감이 다른 표면을 이용하는 행동은 이동 안정성과 발 관리에 모두 의미가 있다.
감각 생태를 이해하면 이 동물이 왜 완전히 비어 있는 전시장보다 복잡한 숲 구조에서 더 자연스럽게 움직이는지 설명된다. 가지의 굵기, 표면 거칠기, 냄새, 잎이 만드는 그림자와 소리까지 모두 정보가 된다. 풍부화는 장식품 수를 늘리는 일이 아니라 선택 가능한 경로와 감각 단서를 안전하게 제공하는 일이다. 연구자는 이런 미세 행동을 기록함으로써 단순한 ‘야행성 수목성’이라는 두 단어를 실제 생활의 장면으로 바꿀 수 있다. 어떤 높이와 굵기의 가지를 반복해 선택하는지, 비가 온 뒤 지면 이용이 늘어나는지, 달빛과 활동 사이에 관계가 있는지를 장기적으로 기록하면 아직 비어 있는 행동생태를 채울 수 있다.
사라신게코는 흔히 알려진 반려 게코보다 자료가 적기 때문에 한 개체의 사육 관찰이 쉽게 ‘종의 성격’으로 확대된다. 얌전함·호기심·대담함 같은 표현은 조명, 은신처, 과거 경험, 성별과 건강에 따라 달라질 수 있다. 야생 연구도 같은 함정을 피하려면 여러 지점과 계절에서 반복된 관찰을 모아야 한다. 개체 차이를 인정하는 일은 정보가 약하다는 뜻이 아니라, 종 평균과 예외를 구분하는 더 정확한 출발점이다. 사진과 영상은 행동 전후의 환경 수치와 함께 기록할 때 비로소 비교 가능한 자료가 된다. 탈피 직전의 정지, 먹이를 기다리는 정지, 공포로 굳은 정지는 겉모습이 비슷해도 맥락과 뒤따르는 행동이 다르다. 그래서 한 장면보다 연속 기록이 중요하다.
참고문헌
- Bauer et al. (2012), Revision of the giant geckos of New Caledonia, Zootaxa 3404: 1–52
- Bauer et al. (2001), New data on the distribution, status, and biology of New Caledonian giant geckos
- Endemia New Caledonia — Correlophus sarasinorum
- The Reptile Database — Correlophus sarasinorum
- Sadlier & Whitaker (2018), IUCN Red List assessment: Correlophus sarasinorum
문서 수정 제안
오류라고 생각되는 문장과 확인 가능한 출처를 알려주세요. 제안은 자동 공개되지 않습니다.